重编程能量系统实现大肠杆菌以CO₂和甲醇为原料的生长与生物生产(Reprogramming energy system for growth and bioproduction from CO₂ and methanol in Escherichia coli)
二、发表单位
三、核心科学问题:
如何通过设计构建正交能量系统(OES)并重编程关键酶,克服大肠杆菌中天然能量载体(ATP/NADH)供应不足和代谢网络严格调控的限制,实现以CO₂和甲醇为原料的高效碳固定、自主生长及多种化学品的生物合成?
四、发表时间
时间:2026年9月26日
链接:https://www.nature.com/articles/s41467-026-77978-z
五、摘要
微生物CO₂同化为可持续生物制造提供了策略,但CO₂还原需要大量能量输入,而天然能量系统受到严格调控并被内源代谢广泛消耗,限制了同化效率。本研究在大肠杆菌中设计并构建了一个正交能量系统,实现胞内NUDH浓度超过7.0 mM,NUDH/NUD⁺比值高于55。随后,设计了CO₂-甲酸-乙酰-CoA-丙酮酸-苹果酸(CAM)途径,并将关键酶重编程为NUDH依赖型操作。将OES驱动的CAM途径与理性重连的天然电子传递链整合,支持工程化大肠杆菌以CO₂和甲醇为原料生长,倍增时间为8.6±0.3 h,最大OD₆₀₀为37.5±5.8。此外,该平台将CO₂同化扩展至从不同CAM途径节点合成多种化学品,包括甲羟戊酸、乳酸、2,3-丁二醇和琥珀酸。总之,这些结果建立了重编程微生物能量代谢和扩展一碳生物转化的框架。
六、研究背景
CO₂是主要温室气体,也是储量最丰富、可再生的碳资源。因此,开发可持续技术将CO₂转化为高附加值化学品对于向碳中和经济转型至关重要。目前,CO₂资源化利用主要有三种方法:化学法、物理法和生物法。其中,微生物固定为化学品生产提供了绿色可持续的途径。异养微生物,特别是大肠杆菌,因其遗传可操作性、生理特性清晰和遗传工具丰富而成为重要的工业宿主。尽管已开发多种策略使大肠杆菌能够利用CO₂,包括重建天然碳固定途径、设计人工CO₂固定路线、适应性实验室进化和引入外源能量供应模块,但实现支持自主生长和生物生产的高效碳固定仍是一项重大挑战。这些工程菌株的性能主要受两个瓶颈限制:还原高度氧化的CO₂需要大量能量,以及依赖复杂途径将CO₂转化为中心代谢物,给宿主带来额外代谢负担。
异养宿主中高效CO₂固定的主要障碍是天然能量载体(特别是ATP和NADH)的有限供应能力。为解决这一挑战,已探索多种策略,包括共代谢底物(如甲酸)和引入外源能量模块,如光捕获半导体生物杂合体。例如,甲酸可被许多异养细胞氧化以产生NADH驱动CO₂固定。近期研究还证明,硫化镉纳米颗粒的合成和质子泵视紫红质的锚定可增强NADH和ATP供应。然而,这些策略面临固有局限。例如,甲酸氧化常快于固定,导致净CO₂排放。此外,外源能量系统的功效受宿主天然细胞网络可塑性的制约。值得注意的是,天然能量载体在代谢网络中的弥散分布和严格调控阻碍了高效CO₂利用所需的高辅因子浓度和有利比值的积累。此外,这些能量分子的过高浓度可能破坏胞内代谢平衡。为克服这些挑战,采用正交能量系统(OES)为非天然宿主中工程化CO₂固定提供了显著优势。这样的系统可最小化内源代谢网络的干扰,并防止正交能量载体被天然代谢途径消耗。这种独立性允许精确可调,促进还原力积累以最大化目标CO₂利用途径的驱动力,同时最小化对整体细胞稳态的干扰。
另一方面,尽管天然CO₂固定途径(包括卡尔文-本森-巴沙姆循环、Wood-Ljungdahl途径、3-羟基丙酸循环和3-羟基丙酸-4-羟基丁酸循环)已被引入异源宿主,但其应用受限于复杂的催化步骤、低固定效率和庞大多酶复合物表达的困难。为解决这些限制,已设计人工途径作为CO₂固定的替代方案。然而,其在体内的实施受到根本冲突的限制:高效微生物生长需要将固定碳快速同化到中心代谢中。由于天然细胞能量环境提供的驱动力有限,合成途径常被迫采用延长的级联反应,消耗多个能量分子用于底物活化以推动平衡正向移动。这些冗余步骤尽管在天然条件下热力学更有利,但施加了巨大的代谢负担并减慢了途径通量。因此,正交能量供应所实现的高驱动力有望支持向极简途径设计的范式转变,即绕过复杂的活化瓶颈,使用最少的酶步骤将CO₂固定与中心代谢枢纽耦合。
七、研究结果
结果1、大肠杆菌中正交能量系统(OES)的设计与构建
为克服内源能量供应的限制,首先需要建立一种正交能量载体,其在胞内保持稳定同时最小化与天然代谢的串扰。烟酰胺单核苷酸腺苷酰转移酶(NMNAT)可利用非ATP核苷三磷酸(NTPs,包括GTP、UTP、CTP和TTP)与NMN生成正交能量分子(NXDs),为OES构建提供了途径。在测试的NTPs中,UTP表现出高胞内可用性和优越稳定性,其基础胞内浓度达63.6±4.2 μM,胞内加载后仅下降8.2%。因此选择UTP设计构建烟酰胺尿嘧啶二核苷酸(NUD/NUDH)系统(图1e)。在该系统中,UTP和NMN被NMNAT缩合形成NUD,随后被甲醇脱氢酶(MDH)以甲醇为电子供体还原为NUDH,供体循环由甲醛歧化酶(FDM)介导。
通过基于系统发育的选择,从106个细菌家族的不同进化枝中选取27个NMNAT候选酶,人源NMNAT(HsNmnat)对UTP表现出最高活性但仍强烈偏向天然底物ATP。通过靶向尿嘧啶部分6 Å内的非保守残基(L27、L30、V186、T187、A218、I221和D220)进行重编程,经过三轮优化获得四突变体HsNmnat(L27K/V186L/T187K/D220E),(kcat/KM)UTP从196 M⁻¹s⁻¹提高至4.03×10⁵ M⁻¹s⁻¹,UTP偏好值提高至3.57×10²。为实现NUDH持续再生,选择甲醇作为电子供体,采用来自Cupriavidus necator N-1的工程化甲醇脱氢酶CT4-1(CmMDH),但其强烈偏向NAD。通过重塑结合口袋,获得改进变体CmMDH(G46E/P189W/L192R/P281V),(kcat/KM)NUD提高至3.55×10³ M⁻¹s⁻¹,NUD偏好达6.11×10²。结构建模显示这些突变将活性位点从10.4 Å收缩至3.9 Å,与NUD分子形成紧密空间契合。
在大肠杆菌W3110中通过基因组整合HsNmnat、CmMDH和来自Pseudomonas putida的甲醛歧化酶(PpFDM)建立体内NUDH生物合成模块。通过融合HsNmnat和CmMDH、删除竞争性UTP/NMN消耗途径(pyrG、pncC、ushA、pnuC和purR)、过表达SUMPK和DaNDK扩大UTP供应、整合RsNAMPT和FfNadE增强NMN生物合成,最终菌株K05积累7.3±0.4 mM胞内NUDH,NUDH/NUD⁺比值达56,远高于天然NADH池(0.08-0.5 mM)和NADH/NAD⁺比值(0.03-0.75)。
图1 正交系统设计
图2 系统代谢工程强化
结果2、OES驱动的CAM*途径设计构建实现高效CO₂固定
设计了CAM途径用于CO₂利用,该七步级联反应组织为三个模块:CO₂活化模块(FDH、FADH和GALS将CO₂组装为乙醇醛)、C2功能化模块(ACPS和PTA将乙醇醛转化为乙酰-CoA)和迭代羧化模块(PFOR、FR和ME驱动连续还原羧化进行碳链延伸)。在体外厌氧条件下模块化组装CAM途径,CO₂活化模块产生0.65±0.14 mM乙醇醛,引入PsPTDH再生NADH后提高至1.98±0.10 mM。整合C2功能化模块和迭代羧化模块分别产生1.17±0.05 mM乙酰-CoA和0.92±0.11 mM L-苹果酸。增加NADH浓度至5.0 mM将反应时间从9 h缩短至6 h,L-苹果酸滴度提高至2.13±0.11 mM。
为克服天然NADH系统的生理限制,使用计算机辅助IESE(识别、排除、筛选和评估)蛋白质定向进化框架将TsFDH、BmFADH和PcME的辅因子特异性从NADH重编程为NUDH。经过迭代突变获得优化变体TsFDH(V198M/T221R/V256K)、BmFADH(A193M/M219R/L237R/H268Q/V283L)和PcME(V300Q/Q391Y/L394K),NUDH偏好得分分别为310、447和94。用NUDH依赖型变体替换相应酶生成CAM途径。在菌株K07中组装CAM*途径生成K08,全细胞催化产生5.28±0.58 mM胞外L-苹果酸,但检测到7.22±0.79 mM甲酸积累。通过三阶段代谢工程策略减少甲酸积累:工程化GBD-SH3-PDZ支架空间共定位三个甲酸代谢酶(K09,甲酸降至2.16±0.14 mM,L-苹果酸增至16.7±1.8 mM);过表达丙酮酸甲酸裂解酶(LIPFL)引入甲酸 salvage 模块(K10,L-苹果酸增至21.7±0.9 mM);最终用C2功能化和迭代羧化模块替换iscR位点将更多通量导向L-苹果酸生物合成(K11,最终胞外L-苹果酸滴度24.5±1.9 mM)。
图3 体外定向进化
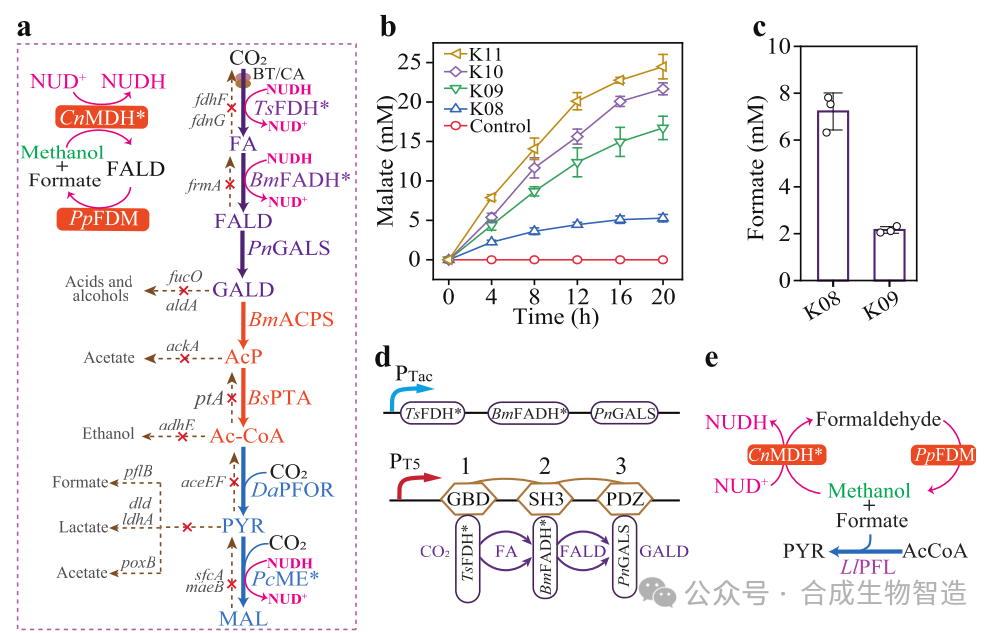
图4 优化和组装
结果3、OES协同电子传递链实现CO₂和甲醇基生长
尽管OES驱动的CAM*途径将CO₂转化为L-苹果酸,但菌株K11在CO₂和甲醇条件下生长受限。为恢复糖异生和生长所需能量供应,在三个战略节点工程化ETC:补充天然还原当量(引入严格NAD依赖型MDH CmMDH生成K12,但死亡率达88.9%,通过与PpFDM融合生成K13将死亡率降至13.5%);增强泛醌介导的电子传递(过表达ubiI生成K14);改善末端电子传递效率(引入膜靶向氧结合蛋白VHb生成K15,OD₆₀₀达0.41±0.03)。
恢复天然能量系统后,关键糖异生中间体(PEP、GAP、F6P和G6P)严重耗竭至<0.5 mM,表明主要生长限制已从能量供应转向糖异生能力。通过过表达mdh、pck和fbp增强糖异生模块(K16,OD₆₀₀增至1.24±0.16);破坏ppc、pykA和pykF消除无效循环(K17,中间体恢复至毫摩尔水平,OD₆₀₀增至2.23±0.22);删除四个主要鞭毛基因簇并引入反馈抗性CRP2*变体(K18),PEP、GAP、F6P和G6P分别增加7.3、7.3、6.5和9.5倍,OD₆₀₀在135 h后达3.23±0.36,倍增时间8.6±0.3 h。补料分批培养实现最大OD₆₀₀ 37.5±5.8。
图5 电子传递链
结果4、OES驱动从不同CAM*途径节点生产化学品
工程化菌株K18从三个CAM*途径节点生产化学品:从乙酰-CoA节点组装atoB-mvaS-mvaE模块(K19),甲羟戊酸平均滴度4.05±0.21 g/L;从丙酮酸节点引入ldhA(K20),乳酸平均滴度4.12±0.26 g/L,组装budB-budA-budC(K21),2,3-丁二醇平均滴度3.15±0.18 g/L;从L-苹果酸节点过表达fumC和frd(K22),琥珀酸平均滴度3.35±0.27 g/L。¹³C同位素示踪显示,在¹³CO₂+¹²C甲醇条件下,CO₂贡献了甲羟戊酸中55.7±1.3%、乳酸中39.4±2.4%、2,3-丁二醇中51.8±2.1%和琥珀酸中54.5±0.5%的碳原子。
图6 生产化学品
八、讨论
本研究在大肠杆菌中构建了OES,实现NUDH高效胞内积累(>7.0 mM)和高比值(NUDH/NUD⁺>55),以甲醇为电子供体。工程化NUDH驱动的CAM途径将CO₂直接转化为中心碳代谢物,整合OES与CAM途径实现了CO₂/甲醇基生长和多种化学品生物合成。其核心创新在于:通过正交能量载体将CO₂固定与天然氧化还原稳态解耦,缓解了长期限制大肠杆菌高效CO₂利用的能量约束;设计了极简ATP非依赖型CO₂固定途径,仅用五、六、七步反应将CO₂直接转化为乙酰-CoA、丙酮酸和苹果酸;开发IESE蛋白质工程策略实现途径级辅因子偏好重编程。工程化大肠杆菌达到倍增时间8.6±0.3 h和最大OD₆₀₀ 37.5±5.8,接近某些天然CO₂固定自养生物的性能,并实现克级多种化学品生产。该研究为微生物能量代谢重编程和一碳生物制造提供了框架。
以上内容转载至 合成生物智造 公众号