摘要
丙酮酸连接中心碳代谢与多种高价值化学品的合成,但其供给受到天然糖酵解调控、代谢分流以及生长与生产竞争的共同限制。江南大学研究团队在大肠杆菌中重构古菌非磷酸化 Entner–Doudoroff(npED)通路,结合关键酶改造、甘油醛碳回收和群体感应动态调控,协调天然 EMP 糖酵解与异源 npED 通路的分阶段运行。在 5 L 生物反应器中,优化菌株 40 h 生产丙酮酸 98.15 g/L;进一步连接下游合成模块后,L-丙氨酸和 L-缬氨酸滴度分别达到 164.28 g/L 和 102.32 g/L。
论文信息
原文标题:Programmed switching between native glycolysis and a non-phosphorylative pathway enables pyruvate-derived biochemicals
期刊:Chemical Engineering Journal
接收日期:2026-10-29
第一作者:黄文潇
通讯作者:刘立明、刘开放
参与机构:江南大学生物工程学院、工业生物技术教育部重点实验室;江南大学生命科学与健康工程学院
01 天然糖酵解为什么需要一条补充路线?
丙酮酸既是细胞维持生长和能量代谢的重要节点,也是 L-丙氨酸、L-缬氨酸等产物的合成前体。增加它的供给,并不只是把某个酶表达得更多:葡萄糖进入天然 Embden–Meyerhof–Parnas(EMP)通路后,还要经过多个反应和分支,中间体同时承担生物量、还原力及其他前体的供给任务。
因此,研究团队关注两个相互关联的问题:能否增加一条较短的葡萄糖到丙酮酸供给路线?这条路线又应当在什么时候增强,才能兼顾细胞生长与产物积累?
研究选择的是古菌中已知的 npED 反应模块。葡萄糖先由葡萄糖脱氢酶(GDH)氧化为葡萄糖酸,再由葡萄糖酸脱水酶(GAD)生成 2-酮-3-脱氧葡萄糖酸(KDG),最后由 KDG 醛缩酶(KDGA)裂解。这三步的直接产物是一分子丙酮酸和一分子甘油醛。核心反应不需要糖磷酸化,但要充分利用葡萄糖的全部碳,仍需连接甘油醛回收支路。
团队比较候选古菌酶后,选择 S. solfataricus 来源的 GDH、GAD 与 P. torridus 来源的 KDGA。在体外一锅级联中,12 h 后检测到 1.62 ± 0.05 mM 丙酮酸和 1.58 ± 0.04 mM 甘油醛,测得代谢物的碳回收率为 99.3 ± 0.5%;同时观察到 NADH 生成。这些结果验证了所选三酶组合的功能。
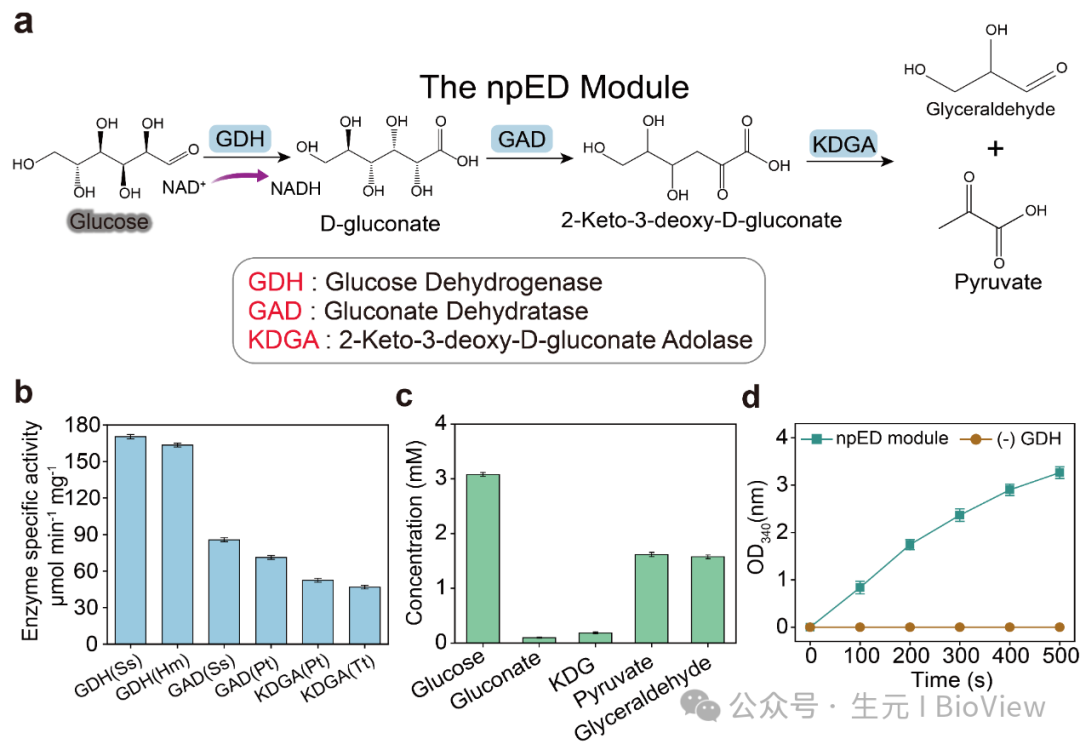
图 1|核心 npED 模块的选择与体外重构。a,三步反应及产物;b,候选酶活性比较;c,级联反应终点代谢物;d,NADH 生成过程。
02 通路能运行,还要处理副产物与碳源入口
为了验证模块在细胞内能否供给丙酮酸,作者先构建生长依赖丙酮酸供应的验证菌株。该菌株在以葡萄糖为唯一碳源的基本培养基中几乎不能生长;引入 npED 模块后,生长得到恢复,说明这条异源路线能够在大肠杆菌中发挥作用。
生产菌株的改造则从减少丙酮酸流向乳酸、甲酸、乙酸和乙醇等支路开始。接入 npED 模块后,研究者检测到 1.73 g/L 甘油醛积累。为减少这一副产物并回收其碳,引入甘油醛脱氢酶,将甘油醛氧化为甘油酸,再连接回中心代谢。随后,团队调整葡萄糖利用方式,删除葡萄糖激酶基因 glk,并引入运动发酵单胞菌来源的葡萄糖易化转运蛋白 Glf,增强非 PTS 葡萄糖输入。
经上述改造得到的 HW12,在摇瓶中生产丙酮酸 12.98 g/L;在 5 L 补料分批发酵中达到 80.69 g/L,表观葡萄糖收率为 0.67 g/g,体积生产强度为 2.02 g/L/h。相比基础产丙酮酸菌株 HW04,产物滴度提高,但最大 OD600 降低 15.93%。这说明新路线增加了丙酮酸供给,也伴随生长代价。
进一步检测发现,HW12 中存在 KDG 积累,而 KDGA 的催化周转数和催化效率低于上游两种酶。作者据此将 KDGA 确定为后续优化的关键瓶颈。
图 2|大肠杆菌中 npED 通路的构建与优化。a、b,生产底盘与生长耦联验证;c,菌株构建过程中的滴度和生物量;d、e,甘油醛积累及回收;f,葡萄糖输入改造;g–i,5 L 发酵中的丙酮酸滴度、比生产速率和生物量。
03 用丙酮酸传感器筛选更高效的 KDGA
直接逐个测量突变体的产物浓度,难以支撑较高通量的酶筛选。团队利用丙酮酸响应转录因子 PdhR,将丙酮酸形成转化为 eGFP 荧光输出,并用 mKate 作为内参,降低细胞状态和表达差异对读数的影响。优化后的传感器在 0–5 g/L 外源丙酮酸范围内,荧光动态范围达到 7.52 倍。
这个筛选体系还需要能区分 KDGA 活性。作者比较了缺少 kdgA 与具有不同 kdgA 表达水平的菌株:KDG 本身产生的背景响应很低,而 KDGA 表达增强后,加入 KDG 能带来更强的荧光输出。因此,KDG 裂解形成的丙酮酸可以作为筛选读数。
结合底物对接、活性口袋周围残基和序列保守性分析,团队选择 15 个位点进行饱和突变,筛得 S44T、T45N 和 S161A 三个有益突变。组合形成的三突变体 KDGA*,使摇瓶丙酮酸滴度达到 17.64 g/L,较使用野生型 KDGA 的 HW12 提高 35.90%;论文报告其催化效率提高 40.90%。
动力学结果显示,KDGA* 的最大反应速率提高,表观 Km 从 1.24 mM 降至 1.05 mM。分子动力学模拟进一步提示,变化主要发生在活性口袋的局部柔性、氢键网络及残基相互作用,而非整体酶架构的大幅改变;这些计算结果为底物结合和催化相关构象更加稳定提供了解释。
不过,将 KDGA* 整合进生产菌株得到 HW25 后,虽然 5 L 发酵滴度提高到 87.52 g/L,生长受损和后期比生产速率下降仍然存在。提高单酶能力之后,生长与生产之间的时间协调成为下一步重点。
图 3|丙酮酸生物传感器辅助 KDGA 改造。a–d,传感器设计、归一化与表达调节;e–g,KDGA 活性的荧光报告与分辨能力;h,候选突变位点;i,单点及组合突变对丙酮酸生产和生长的影响。
04 群体感应让两条路线按生长阶段切换
通量平衡分析提示,持续强制提高 npED 通量会降低预测的最大生长速率。早期代谢物检测也显示,持续运行 npED 的 HW25 中,多种 EMP 中间体水平下降。基于这些结果,作者构建了群体感应介导的双通路动态切换系统 QS-DPS。
该系统由 EsaI 生成信号分子 3OC6-HSL,EsaR 读取信号,并通过双向启动子 PesaS/PesaR 输出相反的调控。细胞密度较低时,EsaR 与 DNA 结合,生长相关输出较强、npED 相关输出较低;随着信号积累,EsaR 脱离结合位点,生长相关输出减弱、npED 相关输出增强。图示中,生长相关一侧连接葡萄糖 PTS 转运基因 ptsG,生产相关一侧连接 gdh–gad–kdgA。
切换的时间取决于信号生成与响应阈值的匹配。EsaI 表达过弱时,信号不足以触发生产状态;表达过强则容易过早切换。经过启动子和核糖体结合位点调节,研究者获得了能够先维持生长、再增强生产的双输出行为。
动态调控菌株 HW26 在 5 L 发酵中,于约 8–10 h 出现两侧启动子活性的明显反向变化;转录和代谢物分析也支持由 EMP 相关生长状态向 npED 相关生产状态转变。最终,HW26 在 40 h 生产丙酮酸 98.15 g/L,表观葡萄糖收率为 0.73 g/g,体积生产强度为 2.45 g/L/h。与 HW25 相比,其最大 OD600 提高 28.11%。
短脉冲 13C 示踪进一步支持生产状态下碳流向 npED 及甘油醛回收支路转移。在作者对三条主要丙酮酸形成支路进行的简化归一化中,npED 直接裂解与甘油醛回收合计约占 79%。这一比例是特定示踪条件和模型下的表观估计,不能直接等同于整个发酵过程的绝对碳流分配。
图 4|群体感应介导的 EMP/npED 双通路动态切换。a,低、高细胞密度下的调控逻辑;b、c,EsaR 表达量调节及其对信号的响应;d,双报告系统;e、f,两侧启动子的响应曲线;g,调节 EsaI 表达后出现的时间依赖双输出切换。
05 连接下游模块:从丙酮酸到两种氨基酸
团队用单步转化的 L-丙氨酸和多步合成的 L-缬氨酸,检验底盘对不同下游路线的支持能力。
L-丙氨酸路线引入枯草芽孢杆菌丙氨酸脱氢酶,并通过减少消旋副产物、增强产物输出改善生产。最终菌株 Ala03 在 5 L、40 h 补料分批发酵中生产 L-丙氨酸 164.28 g/L,表观葡萄糖收率 0.92 g/g,体积生产强度 4.11 g/L/h。其滴度较无 npED 对照 Ala04 提高 27.90%,较持续运行 npED 的 Ala05 提高 17.85%。
L-缬氨酸路线则结合乙酰乳酸合成步骤优化、IlvC 辅因子偏好调整,以及 NADH 依赖的末端还原胺化,使下游还原力需求更好地与底盘匹配。最终菌株 Val03 生产 L-缬氨酸 102.32 g/L,表观葡萄糖收率 0.53 g/g,体积生产强度 2.56 g/L/h,滴度较无 npED 对照和持续运行 npED 的对照分别提高约 30.2% 和 15.2%。
三种产品采用了不同的供氧策略:丙酮酸使用好氧发酵,L-丙氨酸使用先好氧、后厌氧的两阶段策略,L-缬氨酸采用限氧生产。由于培养基还含有玉米浆粉和酵母提取物,上述 g/g 数值均是按葡萄糖消耗计算的表观收率。
图 5|动态切换底盘用于 L-丙氨酸和 L-缬氨酸生产。a、b,两种产物的合成与改造路线;c–e,L-丙氨酸生产菌株的生物量、滴度及比生产速率;f–h,L-缬氨酸生产菌株的对应比较。
06 讨论与展望
作者将这项工作的重点放在已知 npED 模块的工程化整合:通过甘油醛碳回收、非 PTS 葡萄糖输入、瓶颈酶优化,以及依赖细胞密度的自主调控,使较短的前体供给路线与宿主生长需求相协调。酶改造增加通路能力,动态调控则决定这种能力在什么阶段释放。
在未来方向上,作者提出将该底盘与 TCA 循环、磷酸戊糖途径、乙酰辅酶 A 代谢及芳香族氨基酸前体网络连接,探索更多有机酸、氨基酸及其他化学品的合成;同时考虑向谷氨酸棒杆菌、枯草芽孢杆菌和酿酒酵母等工业宿主迁移。跨宿主适配、系统层面的通量分析和动态元件优化,仍需要进一步验证。
参考文献
[1] Huang W, Zhang L, Zhang X, Liu J, Gao C, Liu K, Liu L. Programmed switching between native glycolysis and a non-phosphorylative pathway enables pyruvate-derived biochemicals. Chemical Engineering Journal, 2026, 183709.